Introducción
La eficiencia reproductiva es uno de los principales determinantes económicos de la ganadería bovina, ovina y caprina: determina el intervalo entre partos, el número de terneros o corderos nacidos por año, la tasa de reposición del rebaño y, en el caso del ganado lechero, la persistencia de la producción. Sin embargo, la subfertilidad y la infertilidad figuran entre los problemas sanitarios más frecuentes y económicamente más costosos en los sistemas de producción de rumiantes a escala mundial. Sus manifestaciones son variadas: repetición de servicios, anestro posparto prolongado, quistes ováricos, endometritis subclínica, muerte embrionaria temprana, abortos y, en el macho, deterioro de la calidad seminal y reducción de la libido.
Las causas de estos trastornos son multifactoriales y suelen combinarse en la práctica de campo: desequilibrios nutricionales y energéticos, especialmente durante el periparto; enfermedades infecciosas del aparato reproductor (como brucelosis, campilobacteriosis, tricomoniasis o metritis bacterianas); factores genéticos y de manejo; estrés térmico; y, cada vez más respaldada por la evidencia científica, la exposición crónica a micotoxinas presentes en la dieta (Hartinger et al., 2022; Ogunade et al., 2018; Liu et al., 2023). Durante mucho tiempo, este último factor ha sido subestimado en rumiantes, bajo el supuesto de que la fermentación ruminal actuaba como una barrera protectora suficiente frente a estos contaminantes (Fink-Gremmels, 2008). La investigación de las últimas dos décadas ha matizado sustancialmente esa idea.
Las micotoxinas son metabolitos secundarios producidos por hongos filamentosos, principalmente de los géneros Aspergillus, Fusarium y Penicillium, que contaminan forrajes, ensilajes y sus materias primas tanto en el campo (contaminación precosecha, favorecida por sequía, humedad excesiva o daño por insectos) como durante el almacenamiento (secado inadecuado, ventilación deficiente, humedad residual) (Dellait Animal Nutrition and Health, s.f.). Se estima que una proporción elevada de los granos y forrajes producidos a escala mundial contiene niveles detectables de una o varias micotoxinas, y la coexistencia de múltiples toxinas en un mismo alimento, conocida como contaminación múltiple o “cóctel de micotoxinas”, es la situación más habitual en condiciones reales de explotación, lo que complica tanto el diagnóstico como la evaluación del riesgo real para el rebaño.
Aunque durante décadas se asumió que los rumiantes estaban relativamente protegidos gracias a la capacidad de la microbiota ruminal para degradar estos compuestos, actualmente se ha demostrado que esta protección es parcial: algunas micotoxinas son resistentes a la metabolización ruminal, mientras que otras se transforman en metabolitos con una toxicidad igual o superior que la molécula original. Además, la capacidad de detoxificación ruminal disminuye precisamente en situaciones asociadas con un mayor riesgo reproductivo, como las dietas con una elevada proporción de concentrado, una baja proporción de forraje o los animales de alta producción con menor tiempo de retención ruminal (EFSA, 2017; Fink-Gremmels, 2008).
Uno de los sistemas fisiológicos más sensibles a esta exposición es el reproductivo, tanto en hembras como en machos: las micotoxinas pueden actuar como disruptores endocrinos, generar estrés oxidativo en los gametos, comprometer la función folicular y lútea, alterar el ambiente uterino y afectar directamente al embrión temprano (Guerrero-Netro et al., 2015; Pizzo et al., 2016). El resultado es un problema frecuentemente de carácter subclínico y de difícil diagnóstico diferencial, que puede confundirse fácilmente con otras causas de infertilidad y que, por su naturaleza insidiosa, suele detectarse solo cuando ya ha generado un impacto medible sobre los indicadores reproductivos del rebaño y, en consecuencia, sobre la rentabilidad de la explotación (Fushimi et al., 2015).
Este artículo revisa los mecanismos por los cuales las principales micotoxinas afectan la reproducción en rumiantes, sintetiza la evidencia experimental y de campo disponible, y plantea estrategias de diagnóstico y control aplicables a nivel de granja.
La microbiota ruminal: una barrera incompleta
El rumen actúa como un primer filtro metabólico frente a las micotoxinas ingeridas. Los protozoos y las bacterias ruminales son capaces de degradar total o parcialmente compuestos como la zearalenona (ZEA) o el deoxinivalenol (DON) (EFSA, 2017). Sin embargo, este proceso no siempre equivale a una detoxificación real: la biotransformación ruminal de la ZEA genera α-zearalenol, un metabolito con una actividad estrogénica varias veces superior a la de la molécula original, y β-zearalenol, que presenta efectos tóxicos directos sobre el endometrio (EFSA, 2017; Fink-Gremmels, 2008). Es decir, el metabolismo ruminal puede, en determinadas circunstancias, potenciar el efecto reproductivo negativo en lugar de neutralizarlo.
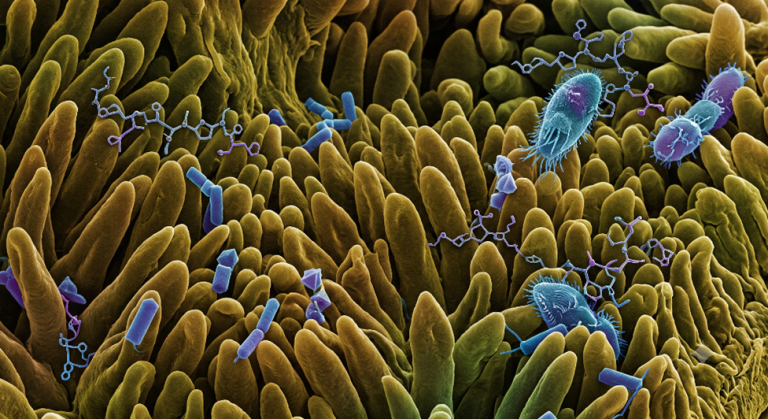
Figura 1. Interacción directa de la microbiota ruminal con las micotoxinas ingeridas a través de la dieta. Los protozoos ciliados y diversas poblaciones bacterianas ruminales actúan de forma conjunta y pueden degradar, hidrolizar o metabolizar compuestos tóxicos.
Principales micotoxinas implicadas y sus efectos reproductivos
Zearalenona (ZEA)
Es la micotoxina con el vínculo más claro y mejor documentado respecto a la disfunción reproductiva en rumiantes. Producida por especies de Fusarium, tiene una estructura similar a los estrógenos endógenos, por lo que actúa como disruptor endocrino mediante su unión a los receptores estrogénicos (EFSA, 2017).
En hembras, la exposición se asocia con signos clínicos como (Fushimi et al., 2015; Pizzo et al., 2016; de Almeida Silva et al., 2021):
- Alteraciones del ciclo estral (celos irregulares o prolongados y ciclos anovulatorios).
- Formación de quistes foliculares asociados a actividad estrogénica.
- Hipertrofia e inflamación vulvar y, en casos graves, prolapso vaginal o uterino en animales no gestantes.
- Reducción del tamaño del cuerpo lúteo y alteración de la población de folículos antrales.
- Menor calidad ovocitaria en novillas.
- Mayor mortalidad embrionaria y riesgo de aborto.
En machos jóvenes se han descrito signos de feminización, hipertrofia mamaria y reducción de las concentraciones circulantes de testosterona. Por otro lado, en toros adultos se han descrito casos de infertilidad vinculados al estrés oxidativo inducido por esta toxina (Liu et al., 2023).
Las observaciones de campo sugieren que concentraciones de ZEA superiores a 250 µg/kg en la ración total podrían estar asociadas con alteraciones reproductivas, mientras que niveles cercanos a 500 µg/kg se han asociado con cuadros de hiperestrogenismo clínicamente evidentes. No obstante, la respuesta puede variar según el estado fisiológico del animal: algunos estudios en vacas posparto no encuentran efectos claros sobre la fertilidad pese a alteraciones foliculares medibles (Fushimi et al., 2015), lo que indica que la dosis, la duración de la exposición y la etapa productiva modulan la severidad del cuadro.
Fushimi et al. (2015) evaluaron vacas lecheras en el posparto expuestas a ZEA por debajo del umbral de contaminación permitido en Japón y encontraron alteraciones medibles en la población de folículos antrales ováricos, aunque sin un efecto estadísticamente concluyente sobre la fertilidad global del grupo, lo que evidencia que el daño subclínico puede preceder a la manifestación de infertilidad franca.
Un ensayo controlado en vacas no lactantes alimentadas con una dieta que contenía aproximadamente 25 ppm de ZEA en la dieta mostró una reducción significativa del tamaño de los cuerpos lúteos respecto al grupo control, lo que respalda un efecto directo sobre la función luteal.
Almeida Silva et al. (2021), citados en un estudio publicado en Journal of Dairy Science (2025), reportaron que incluso una concentración relativamente baja de ZEA (0,3 mg/kg de dieta) se asoció con una disminución de la calidad ovocitaria en bovinos, aunque sin afectar significativamente a la tasa posterior de desarrollo embrionario, lo que sugiere un umbral diferencial entre el daño al ovocito y el daño al embrión ya formado.
En contraste, Takagi et al. (2008) no hallaron efecto de concentraciones elevadas de ZEA sobre la fecundación in vitro ni sobre la tasa de desarrollo embrionario, lo que subraya la variabilidad de resultados según el diseño experimental, la vía de exposición y el momento del ciclo reproductivo evaluado.
Estudios in vitro sobre células de la granulosa de folículos pequeños bovinos (Pizzo et al., 2016) mostraron que la ZEA y sus metabolitos, tanto de forma individual como en combinación con DON, alteran la proliferación celular, la producción de esteroides y la expresión génica relacionada con la esteroidogénesis.
En condiciones de campo, un estudio publicado en Mycotoxin Research (2024) que monitoreó biomarcadores urinarios de ZEA y beta-zearalenol en rebaños lecheros documentó que concentraciones urinarias de ZEA superiores a 2,7 ng/mL se asociaban con un intervalo significativamente más prolongado hasta la siguiente gestación, valor descrito previamente en explotaciones canadienses (Tazerout, 2016) y posteriormente evaluado en el nuevo muestreo.
Deoxinivalenol (DON) y tricotecenos
El DON y otros tricotecenos (toxina T-2, HT-2, diacetoxiscirpenol, nivalenol), también de origen Fusarium, afectan principalmente a la función gastrointestinal y a la función inmunitaria, pero su repercusión reproductiva es en gran medida indirecta: la inmunosupresión, la reducción del consumo de alimento y el deterioro del estado metabólico general comprometen la eficiencia reproductiva al retrasar la reanudación de la ciclicidad posparto y afectar la calidad del ambiente uterino (Ogunade et al., 2018; Guerrero-Netro et al., 2015). A escala folicular, el DON tiene además un efecto directo sobre la esteroidogénesis de las células de la granulosa.
Guerrero-Netro et al. (2015), en un sistema de cultivo libre de suero con células de la granulosa bovina, determinaron que el DON inhibe la secreción de estradiol y progesterona, reduce la expresión del gen CYP19A1 (aromatasa, clave en la síntesis de estrógenos) y aumenta la apoptosis celular mediante la activación de las vías MAPK (fosforilación de p38 y JNK), lo que proporciona un mecanismo molecular plausible para la disfunción folicular observada en campo.
Un estudio longitudinal de dos años en rebaños lecheros europeos, publicado en Journal of Dairy Science (2023), relacionó el manejo de la alimentación y la exposición combinada a micotoxinas de Fusarium con alteraciones en la salud de la ubre, el rendimiento productivo y la fertilidad del rebaño, reforzando que en condiciones reales de granja los efectos rara vez pueden atribuirse a una única micotoxina.
Una investigación de campo diseñada específicamente para evaluar los efectos combinados de ZEA, DON y fumonisina B1 sobre 486 vacas Holstein analizó metabolitos sanguíneos, producción de leche, actividad estral, tasa de gestación y salud uterina. Durante el período de contaminación se observó una elevada proporción de vacas con metritis clínica y una mayor incidencia de quistes foliculares ováricos, y los autores señalan que la coexposición a varias micotoxinas puede desempeñar un papel relevante en la enfermedad ovárica quística, con la recuperación del rebaño que requiere un tiempo prolongado tras el cese de la exposición.
Aflatoxinas (AFs)
Producidas por Aspergillus flavus y A. parasiticus, su principal preocupación en los rumiantes lecheros es la transferencia a la leche como aflatoxina M1 (AFM1), con implicaciones en inocuidad alimentaria (Hartinger et al., 2022). Desde el punto de vista reproductivo, su hepatotoxicidad compromete indirectamente la fertilidad al alterar el metabolismo de esteroides sexuales y generar inmunosupresión. La descendencia de animales expuestos puede mostrar mayor susceptibilidad a procesos inflamatorios e infecciones secundarias (Hartinger et al., 2022; Liu et al., 2023).
En bubalinos, la administración de AFs en la dieta de toros redujo el porcentaje de espermatozoides vivos de 91,1 % a 80,8 % y aumentó la proporción de anomalías espermáticas hasta el 54 %, con evaluación del semen una, cuatro y ocho semanas después de la exposición (Hafez et al., 1982).
En carneros Merino, un ensayo de 92 días en el que se administraron AFs en la dieta mostró que, a partir de la tercera semana de almacenamiento del semen en estado líquido a 5 °C, el grupo expuesto presentó una motilidad espermática significativamente menor y una mayor proporción de espermatozoides anormales y no viables en comparación con el grupo control, efecto que fue parcialmente revertido mediante la suplementación con glucomanano esterificado como secuestrante (Ataman et al., 2014).
A nivel bovino, un estudio publicado en Toxicology (2017) expuso espermatozoides procedentes de eyaculado y epidídimo de toro a aflatoxina B1 (AFB1) en concentraciones crecientes (0,1 a 100 µM) y observó una disminución de la viabilidad espermática, hiperpolarización de la membrana mitocondrial y aumento de la fragmentación del ADN espermático incluso tras exposiciones cortas, así como una reducción de la capacidad fecundante en fertilización in vitro.
Un estudio de seguimiento en la revista Reproduction (2020) analizó el proteoma de espermatozoides bovinos tratados con AFB1 y el transcriptoma de los embriones resultantes, encontrando que la fecundación con espermatozoides expuestos a la toxina que presentaban apoptosis no produjo blastocistos, mientras que la fecundación con la subpoblación no apoptótica resultó en una menor tasa de segmentación y en blastocistos con alteraciones en la expresión de genes clave implicados del desarrollo embrionario temprano (POU5F1 y SOX2), lo que demuestra un efecto transmisible desde el gameto masculino hacia el embrión, como se observa en la Figura 2.
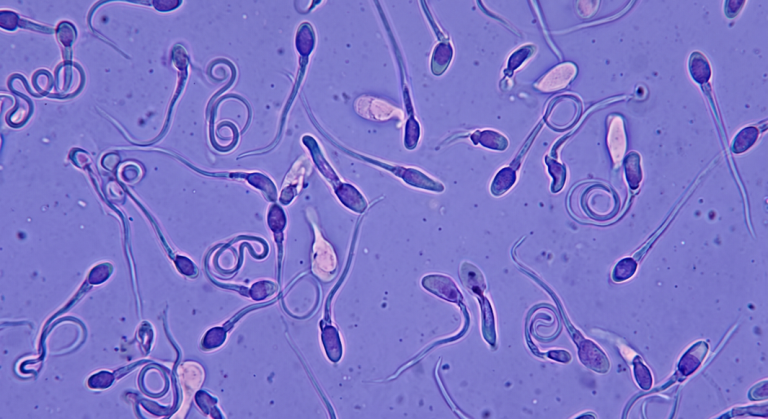
Figura 2. Alteraciones microscópicas en gametos masculinos. Se ilustran las alteraciones asociadas a la exposición a AFs y ZEA. Se observa una elevada proporción de espermatozoides con anomalías morfológicas: cabezas deformadas, colas enrolladas o fragmentadas.
Fumonisinas (FBs)
Presentan una metabolización lenta e incompleta en el rumen, lo que puede contribuir a sus efectos hepatotóxicos y nefrotóxicos (Fink-Gremmels, 2008). Sus efectos reproductivos son menos específicos que los de la ZEA, pero contribuyen al deterioro del estado general del animal y, por tanto, a una disminución de la eficiencia reproductiva del rebaño (Ogunade et al., 2018).
Ocratoxina A (OTA)
Está menos estudiada en rumiantes que en monogástricos debido a su elevada degradación ruminal, aunque ante exposiciones elevadas o prolongadas puede contribuir a nefrotoxicidad y a un deterioro metabólico que repercute indirectamente en la función reproductiva (Fink-Gremmels, 2008).
Mecanismos fisiopatológicos generales
Los efectos reproductivos de las micotoxinas en rumiantes pueden explicarse mediante varias vías, muchas veces simultáneas:
- Disrupción endocrina: especialmente por la ZEA y sus metabolitos, que mimetizan la acción de los estrógenos y alteran el eje hipotálamo-hipófisis-gónadas (EFSA, 2017; Pizzo et al., 2016).
- Estrés oxidativo: daño en ovocitos, espermatozoides y tejido testicular, lo que compromete la calidad de los gametos (Liu et al., 2023).
- Inmunosupresión: mayor susceptibilidad a infecciones uterinas y mastitis, que retrasan la involución uterina y la concepción (Ogunade et al., 2018; Hartinger et al., 2022).
- Disfunción ruminal y hepática: una menor eficiencia metabólica general, que puede contribuir a un balance energético negativo, un factor conocido asociado a la subfertilidad posparto (Fink-Gremmels, 2008).
- Efectos transgeneracionales: mayor predisposición de la descendencia a procesos inflamatorios (Hartinger et al., 2022).
Las consecuencias reproductivas se reflejan en indicadores reproductivos concretos: mayor intervalo entre partos, un mayor número de servicios por concepción, incremento de la tasa de repetición de celos, mayor incidencia de quistes ováricos y pérdidas embrionarias; como se observa en la Figura 3. A esto se suma la disminución de la producción y de la calidad de la leche que suele acompañar a la contaminación por micotoxinas, lo que agrava el impacto económico global sobre la explotación.
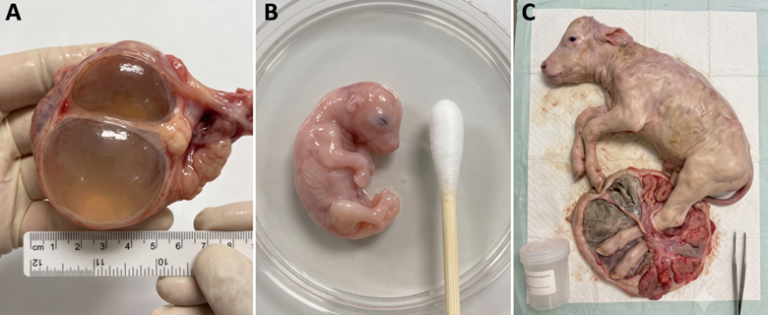
Figura 3. A) Vista macroscópica de una estructura ovárica bovina con presencia de grandes folículos asociados a actividad estrogénica. B) Embrión bovino recuperado en una fase temprana del desarrollo. C) Feto bovino abortado junto con sus anexos fetales en un laboratorio de diagnóstico veterinario.
Diagnóstico y evaluación de riesgo
Identificar la exposición a micotoxinas como causa de subfertilidad es complejo, ya que sus signos pueden solaparse con otras causas nutricionales, infecciosas y de manejo (Hartinger et al., 2022). Un abordaje adecuado debe combinar: pruebas rápidas de cribado para materias primas bajas en fibra, recuento de mohos y análisis de micotoxinas (idealmente por LC-MS/MS, que permite cuantificar múltiples micotoxinas con alta sensibilidad) en los ingredientes fibrosos y en la ración total mezclada (TMR), así como correlacionar los hallazgos analíticos con los registros reproductivos y productivos del rebaño.
Conclusión
Aunque los rumiantes presentan una capacidad parcial para degradar micotoxinas a nivel ruminal, esta protección resulta insuficiente frente a compuestos como la ZEA, cuya actividad estrogénica puede incluso verse potenciada por el propio metabolismo ruminal, lo que puede comprometer directamente la función reproductiva de hembras y machos. El abordaje de este problema requiere una estrategia integral que combine prevención agronómica, monitorización analítica periódica de la dieta y seguimiento de los indicadores reproductivos del rebaño, ya que un diagnóstico basado exclusivamente en signos clínicos suele ser tardío y poco específico.